 EN

Il metabolismo epatico alimenta la produzione di uova: dalla sintesi di VLDL all’assemblaggio del tuorlo
La sintesi di VLDL come ponte biochimico tra metabolismo epatico e deposizione del tuorlo
La produzione giornaliera di un tuorlo ricco di nutrienti è uno dei compiti biosintetici più impegnativi che una gallina ovaia deve affrontare — e dipende interamente dalla capacità del fegato di produrre ed esportare lipoproteine a very low density (VLDL). Sotto stimolazione estrogenica, il fegato della gallina riorienta il proprio metabolismo per privilegiare l’assemblaggio delle VLDL, convogliando trigliceridi, fosfolipidi, colesterolo e vitamine liposolubili in queste particelle ricche di lipidi. Una volta secreto nel torrente circolatorio, ogni particella VLDL si lega alla proteina correlata al recettore LDL 8 (LRP8) dell’oocita, innescando una endocitosi mediata da recettore che deposita direttamente il carico lipidico nel tuorlo in via di sviluppo. Praticamente tutti i lipidi del tuorlo hanno origine epatica; qualsiasi alterazione nella sintesi delle VLDL arresta la crescita follicolare e la produzione di uova entro pochi giorni. Durante il picco di deposizione, l’esportazione epatica di trigliceridi associati alle VLDL aumenta da tre a cinque volte rispetto agli uccelli immaturi — in perfetto sincronismo con il ciclo di maturazione follicolare di 24 ore. Senza una formazione robusta di VLDL, non è possibile sostenere il flusso lipidico massiccio richiesto per l’assemblaggio del tuorlo, rendendo così il metabolismo epatico il motore centrale della produzione di uova.
Evidenze trascrittomiche: sovraregolazione di ApoVLDL-II, FABP1 e MTTP durante il picco di deposizione
Il profilo trascrittomico rivela una sovraregolazione coordinata di tre geni essenziali per la sintesi di VLDL e il trasporto lipidico nel fegato della gallina ovaiole all’inizio del picco produttivo. ApoVLDL-II , un’apolipoproteina specifica degli uccelli, stabilizza le VLDL nascenti e inibisce la lipolisi prematura, garantendo una consegna integrale dei trigliceridi all’ovaio. FABP1 (proteina legante gli acidi grassi epatica) trasporta gli acidi grassi nel reticolo endoplasmatico per la sintesi dei trigliceridi, riducendo contemporaneamente lo stress lipotossico. MTTP (proteina microsomiale di trasferimento dei trigliceridi) catalizza il caricamento dei trigliceridi sull’apolipoproteina B per formare VLDL pronte alla secrezione. Studi riportano un aumento epatico da 3 a 5 volte MTTP concentrazione di mRNA e di ApoVLDL-II plasmatico durante la fase di massima deposizione—correlata direttamente con un aumento comparabile dell’output plasmatico di trigliceridi VLDL (Walzem, 1999). Questa firma trascrittomica conferma che il metabolismo epatico, a livello molecolare, regola l’efficienza riproduttiva e la produzione di uova.
Quando il metabolismo epatico va fuori controllo: la sindrome del fegato grasso come fattore limitante della produttività
Prevalenza della steatosi epatica negli allevamenti ad alta persistenza e sua correlazione diretta con la riduzione della produzione di uova
Quando il metabolismo epatico non riesce a bilanciare la sintesi, l’esportazione e l’ossidazione dei lipidi, si manifesta la steatosi epatica—comunemente denominata sindrome del fegato grasso (FLS)—come un vincolo silenzioso ma potente sulla produttività. Indagini sul campo indicano che oltre il 40% delle galline in branchi che mantengono una produzione di picco superiore al 90% per più di 20 settimane sviluppa un’infiltrazione lipidica epatica da moderata a grave (white paper industriale 2023). Gli animali colpiti subiscono immediatamente una riduzione del 12–18% nella produzione giornaliera di uova, mentre la persistenza della deposizione diminuisce del 15–22% prima dell’insorgenza di segni clinici. Una meta-analisi del 2024 ha associato ogni aumento del 10% del contenuto lipidico epatico a un calo del 5–7% della massa d’uovo (Poultry Science Research, 2024). L’effetto cumulativo accorcia la durata produttiva di 6–10 settimane—trasformando genetica ad alta persistenza in un onere economico qualora la salute epatica venga trascurata. La steatosi subclinica precoce rappresenta quindi un indicatore affidabile a monte di una futura perdita di produzione.
Desequilibrio energetico-proteico e lipogenesi indotta dagli estrogeni: due fattori che causano un sovraccarico metabolico
Due forze interconnesse spingono il metabolismo epatico verso il collasso. In primo luogo, un eccesso prolungato di energia alimentare rispetto alle proteine devia i carboni scheletrici lontano dai precursori del tuorlo e verso de novo la sintesi degli acidi grassi. In secondo luogo, l’ambiente ricco di estrogeni caratteristico della fase di deposizione attiva attiva in modo potente SREBP-1c — un fattore trascrizionale chiave che aumenta l’espressione degli enzimi lipogenici, tra cui l’acetil-CoA carbossilasi e la sintasi degli acidi grassi. Il risultato è un sovraccarico metabolico: la sintesi dei trigliceridi supera la capacità di esportazione tramite le VLDL, causando un accumulo lipidico intraepatico. Questa doppia azione è particolarmente aggressiva nelle moderne galline ovaiole ad alta resa, selezionate per cicli ovulatori prolungati. Senza un adeguato bilanciamento nutrizionale o endocrino, il fegato entra in uno stato pro-lipogenico e anti-ossidativo che compromette progressivamente la durata produttiva.
Leve nutrizionali ed ormonali per ottimizzare il metabolismo epatico nelle galline ovaiole
Attivazione indotta dagli estrogeni di SREBP-1c e segnalazione acido biliare–FXR: controllo coordinato della lipogenesi e dell’ossidazione epatica
L’estrogeno è l’architetto principale del metabolismo lipidico riproduttivo, ma anche un segnale a doppio taglio. Durante il picco di deposizione delle uova, i livelli crescenti di 17β-estradiolo attivano SREBP-1c negli epatociti, accelerando de novo lipogenesi per soddisfare la richiesta di lipidi per il tuorlo, mentre contemporaneamente si potenzia l'espressione dei meccanismi di assemblaggio delle VLDL. Ciò determina uno stato di lieve ritenzione epatica di lipidi, funzionale. Il controllo metabolico proviene dalla via degli acidi biliari–FXR (recettore Farnesoide X), che rileva livelli elevati di acidi biliari e promuove la β-ossidazione degli acidi grassi, spostando il fegato verso l'utilizzo piuttosto che l'accumulo di grassi. Pertanto, il carico epatico netto di lipidi riflette non soltanto l'intensità degli estrogeni, ma anche la risposta proporzionale della segnalazione FXR. Gestire questo asse coordinato—anziché sopprimere esclusivamente gli estrogeni—è fondamentale per mantenere un'elevata produzione senza scivolare nella patologia. I polifenoli, ad esempio, hanno dimostrato di modulare l'attività di SREBP e migliorare il profilo lipidico epatico complessivo.
Supporto lipotropo basato su evidenze: colina, betaina e vitamina B12 riducono i trigliceridi epatici di ≥32% (p<0,01)
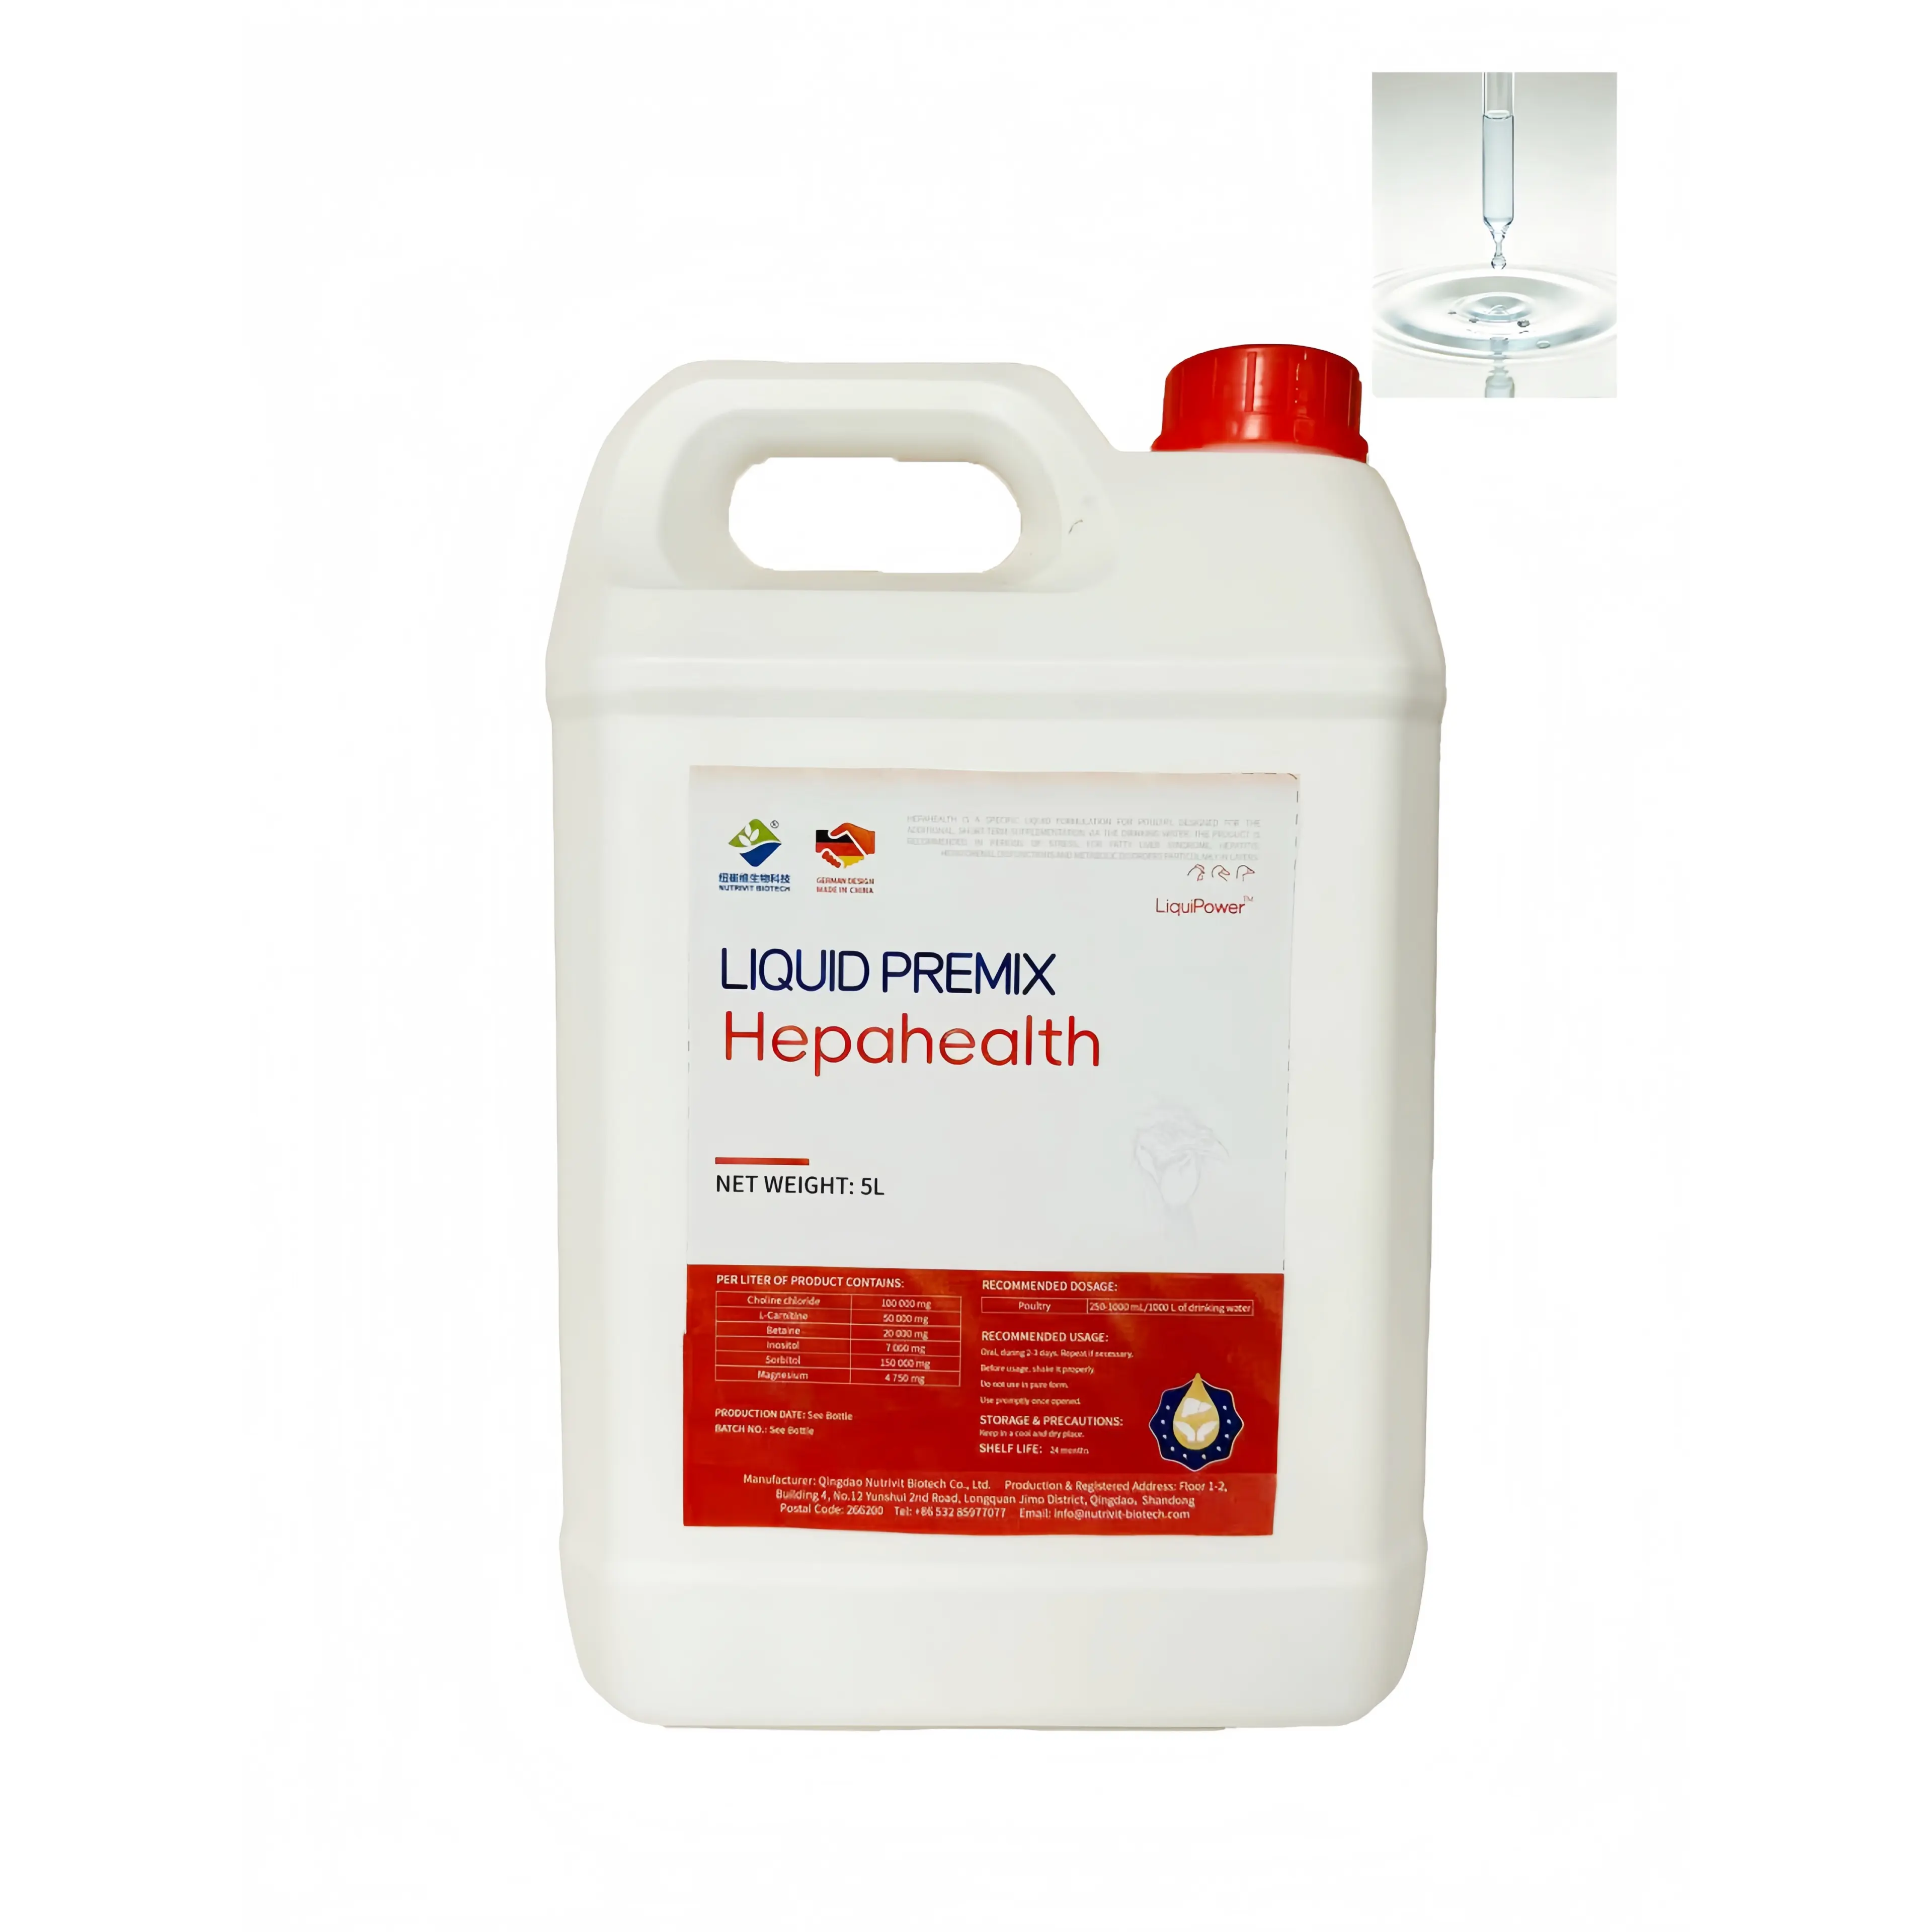
Quando l’esportazione epatica dei trigliceridi si arresta, ne consegue la sindrome del fegato grasso e la produzione di uova crolla. Studi controllati dimostrano che la supplementazione con colina, betaina e vitamina B12 riduce il contenuto epatico di trigliceridi di ≥32% (p<0,01), ripristinando al contempo la massima produzione di uova. La loro sinergia è biochimicamente precisa: la colina è un precursore diretto della fosfatidilcolina (PC), il fosfolipide strutturale essenziale per l’assemblaggio e la secrezione delle particelle di VLDL. La betaina dona gruppi metile per rigenerare la metionina, risparmiando così la colina necessaria per la sintesi della PC. La vitamina B12 agisce come cofattore obbligatorio della metionina sintasi, preservando l’integrità di questo ciclo a un solo carbonio.
| Fattore lipotropo | Ruolo principale nell’esportazione epatica dei lipidi | Conseguenza della carenza |
|---|---|---|
| Colina | Precursore diretto della fosfatidilcolina (PC), necessario per l’assemblaggio e la secrezione delle VLDL | Accumulo intraepatico di grasso, ridotta consegna dei precursori del tuorlo |
| BETAINE | Donatore di gruppi metile per la rigenerazione della metionina dall’omocisteina, risparmiando il pool di colina | Capacità ridotta di sintesi del PC, carenza secondaria di colina |
| Vitamina B12 | Coenzima della metionina sintasi, che mantiene il ciclo dei gruppi metilici per il metabolismo della betaïna e della colina | Trasferimento bloccato dei gruppi metilici, con conseguente compromissione funzionale dei percorsi di risparmio della colina |
Questa strategia nutrizionale mirata non è opzionale: affronta la causa biochimica primaria della sindrome epatica emorragica da fegato grasso, garantendo al fegato i precursori necessari per impacchettare ed esportare efficacemente i lipidi.
Metabolismo epatico e resilienza ossidativa: le vitamine A, E e D3 come modulatori della longevità riproduttiva
Idrossilazione epatica della vitamina D3 (CYP2R1/CYP27A1) e omeostasi del calcio per una qualità del guscio costante
L’attivazione della vitamina D3 inizia nel fegato tramite idrossilazione da parte dei citocromi CYP2R1 e CYP27A1 — funzioni enzimatiche fondamentali per un sano metabolismo epatico. La forma risultante, 25-idrossivitamina D3 (25[OH]D3), è la principale forma circolante, successivamente convertita nei reni nella forma biologicamente attiva 1,25(OH)₂D₃. Nei polli ovaiole, l’esportazione giornaliera di calcio per la formazione del guscio supera i 2 g. Anche lievi riduzioni della funzione metabolica epatica diminuiscono la produzione di 25(OH)D3, compromettendo l’assorbimento intestinale del calcio e l’integrità del guscio. Antiossidanti come le vitamine A ed E proteggono gli epatociti dai danni ossidativi, preservando l’attività degli enzimi CYP e garantendo un efficiente metabolismo della vitamina D. Sostenendo la sintesi della calbindina e il trasporto del calcio, una funzione epatica ottimale assicura una qualità costante del guscio durante l’intero ciclo di deposizione. L’integrazione dietetica mirata con antiossidanti supporta quindi sia la resilienza epatica sia risultati economici misurabili — tra cui un minor tasso di rotture delle uova.
FAQ (Domande Frequenti)
Qual è il ruolo delle VLDL nella produzione delle uova?
Le VLDL, prodotte nel fegato, trasportano lipidi essenziali verso il tuorlo, consentendo l’assemblaggio del tuorlo e la produzione delle uova.
In che modo la sindrome del fegato grasso influisce sulle galline ovaiole?
La sindrome del fegato grasso riduce la produzione di uova e la produttività compromettendo le funzioni epatiche fondamentali per il metabolismo lipidico.
Quali nutrienti aiutano a migliorare la salute epatica nelle galline ovaiole?
Agenti lipotropi come la colina, la betaina e la vitamina B12, nonché le vitamine A, E e D3, supportano il metabolismo epatico e la resilienza ossidativa.
Quali fattori causano la steatosi epatica nelle galline ovaiole?
Dieta con eccesso di energia rispetto alle proteine e lipogenesi stimolata dagli estrogeni sono i principali fattori scatenanti della sindrome del fegato grasso.
Indice dei Contenuti
- Il metabolismo epatico alimenta la produzione di uova: dalla sintesi di VLDL all’assemblaggio del tuorlo
- Quando il metabolismo epatico va fuori controllo: la sindrome del fegato grasso come fattore limitante della produttività
- Leve nutrizionali ed ormonali per ottimizzare il metabolismo epatico nelle galline ovaiole
- Metabolismo epatico e resilienza ossidativa: le vitamine A, E e D3 come modulatori della longevità riproduttiva