 EN

Основи метаболизма јетре код пилића: Синтеза, оксидација и извоз липида
Липогенеза де ново, митохондријска β-оксидација и конзумирање ВЛДЛ-а у птичим хепатоцитима
Пилећа је јетра је централно средиште за метаболизам липидауникално је активно у де ново липогенези (ДНЛ), митохондријској β-оксидацији и саставу липопротеина веома ниске густине (ВЛДЛ). За разлику од сисара, птичи хепатоцити преобразују вишак дијететских угљених хидрата у масне киселине у високој брзини, првенствено синтетизују палмитат, који се брзо естерификује у триглицериде. Ови триглицериди се пакују у VLDL честице путем микросомалног триглицеридног трансферног протеина (МТП) и аполипопротеина Б-100 (апоБ-100) за извоз посебно у јајници код кокошица носача, где снабдевају липидима жутка Када прилив енергије прелази експортни или оксидациони капацитет, триглицериди се акумулирају као цитоплазматске липидне капице. С друге стране, током гладовања или повећане потребе за енергијом, митохондријска β-оксидација разбија складиштене масне киселине како би генерисала АТП. Улазак дуговерижних масних киселина у митохондрије регулише карнитин палмитоилтрансфераза-1 (ЦПТ-1), што га чини критичном контролном тачком. У модерним слојевима са високим приносом, трајна потражња за липидима жуткавице ствара изванредан липидни флукс у јетри; чак и мали дисбаланси између ДНЛ-а, извоза ВЛДЛ-а и β-оксидације могу брзо склонити скалу ка патолошко
Кључни регулаторни ензими: АЦЦ, ФАС, ЦПТ-1, и њихова експресија осетљива на хранљиве материје
Ацетил-ЦОА карбоксилаза (АЦЦ) и масна киселина синтетаза (ФАС) покрећу липогенезу у јетри код пилића, а АЦЦ катализатор преображања ацетил-ЦОА у маланил-ЦОА, који ограничава брзину, а Од суштинског значаја је да малонил-ЦОА такође инхибира ЦПТ-1, обезбеђујући да синтеза и оксидација масних киселина остану реципрочно регулисане. Ова координација спречава метаболичке сукобе, али такође значи да повећање АЦЦ/ФАС-а које се води хранљивим материјама може директно потиснути сагоревање масти. Екпресија ових ензима је строго контролисана хормонским и дијетарским сигналима: инсулин (повишен након хране са високим нивоом скробе) активира протеин-1c који се везује за регулаторни елемент стерола (SREBP-1c), стимулишући транскрипцију АЦЦ и ФАС Глукагон (доминантан током гладовања) повећава активност ЦПТ- 1 и промовише β- оксидацију. Дијетални метил донаториукључујући метионин и холиндаље модулишу овај систем утицаја на епигенетску регулацију и стабилност ензима. У комерцијалним слојевима који су хранили енергијски густи рациони, хронична хиперинсулинемија може подићи АЦЦ и ФАС експрезију изнад физиолошког капацитета. Без пропорционалне регулације механизма за сакупљање ВЛДЛ-а или CPT-1медијације оксидације, јетра постаје преплављена, што истиче како дисрегулација само неколико питајућих ензима може дестабилизовати целу хипетичку равнотежу липида.
Порушавање метаболизма јетре изазива патогенезу синдрома масти јетре
Од резистенције на инсулин до акумулације липида у јетри: метаболичка каскада у слојевима са високим приносом
Синдром масти у јетри у слојевима са високим приносом не настаје из изолованих дефеката, већ из самоподстицања метаболичке каскаде која се покреће хроничним преоптерећењем хранљивим материјама. Четири међузависне фазе убрзавају акумулацију печених липида:
| Фаза | Кључна прелаза | Последице |
|---|---|---|
| Инсулинова резистентност | Сигнализација инсулина у јетри се смањује упркос системској хиперинсулинемији. | Неконтролисана активација СРЕБП-1ц-а доводи до прекомерног ДНЛ-а. |
| Претерана липогенеза јетре | Углехидрати преплавају јетру преко капацитета за складиштење гликогена, што изазива огромну β-оксидацију. | Триглицериди се акумулирају као цитоплазматске капи липида. |
| Недостатак ВЛДЛ монтаже | Хепатоцити постају засићениМТП активност опада и синтеза апоБ-100 се ослабљава под оксидативним и ЕР стресом. | Триглицеридни извоз се колапсира, заробљавајући масти унутар ћелија. |
| Само-промножавајућа петља | Накупљени липиди оштећују функцију митохондрија и погоршавају резистенцију на инсулин. | Стеатоза се убрзава, и у року од неколико дана напредује у клинички синдром масти у јетри. |
Ова каскада одражава неуспех система, а не један дефект ензима, већ један који је укорењен у неисправности између генетске селекције за производњу и управљања исхраном.
Упаљење као последица, а не као узрок: ТЛР4/НФ-κБ активација секундарна метаболичком преоптерећењу
Запаљење јетре у синдрому масти јетре је последица метаболичке дисфункције, а не њено порекло. Како се липидне капљице шире, слободне масне киселине и реактивни производи липидне пероксидације (нпр. 4-хидроксиноненал) проливају у цитозол и ванћелијски простор. Они делују као молекуларни обрасци повезани са оштећењем (ДАМП) који се везују за Тол- лике рецептор 4 (ТЛР4) на Купферске ћелије, изазивајући нуклеарну транслокацију НФ- кБ и регулишу проинфламаторне цитокине као што су ТН Међутим, овај имунолошки одговор се појављује тек након што су значајна акумулација липида и митохондријски стрес већ угрозили ћелијску хомеостазу. Критично, интервенције које обнављају метаболички токкао што је подршка извозу ВЛДЛ-а или повећање β-оксидацијеснижавају упалу без имуносупресива, потврђујући да је упала биомаркер и појачавачне покретачболести. Стога терапијски фокус мора да остане на ребалансирању липида у јетри.
Метаболизам јетреЦирене стратегии исхране за одрживу превенцију ФЛС-а
Метил донатори (холин, бетаин) и масне киселине за повраћање метаболичког потока
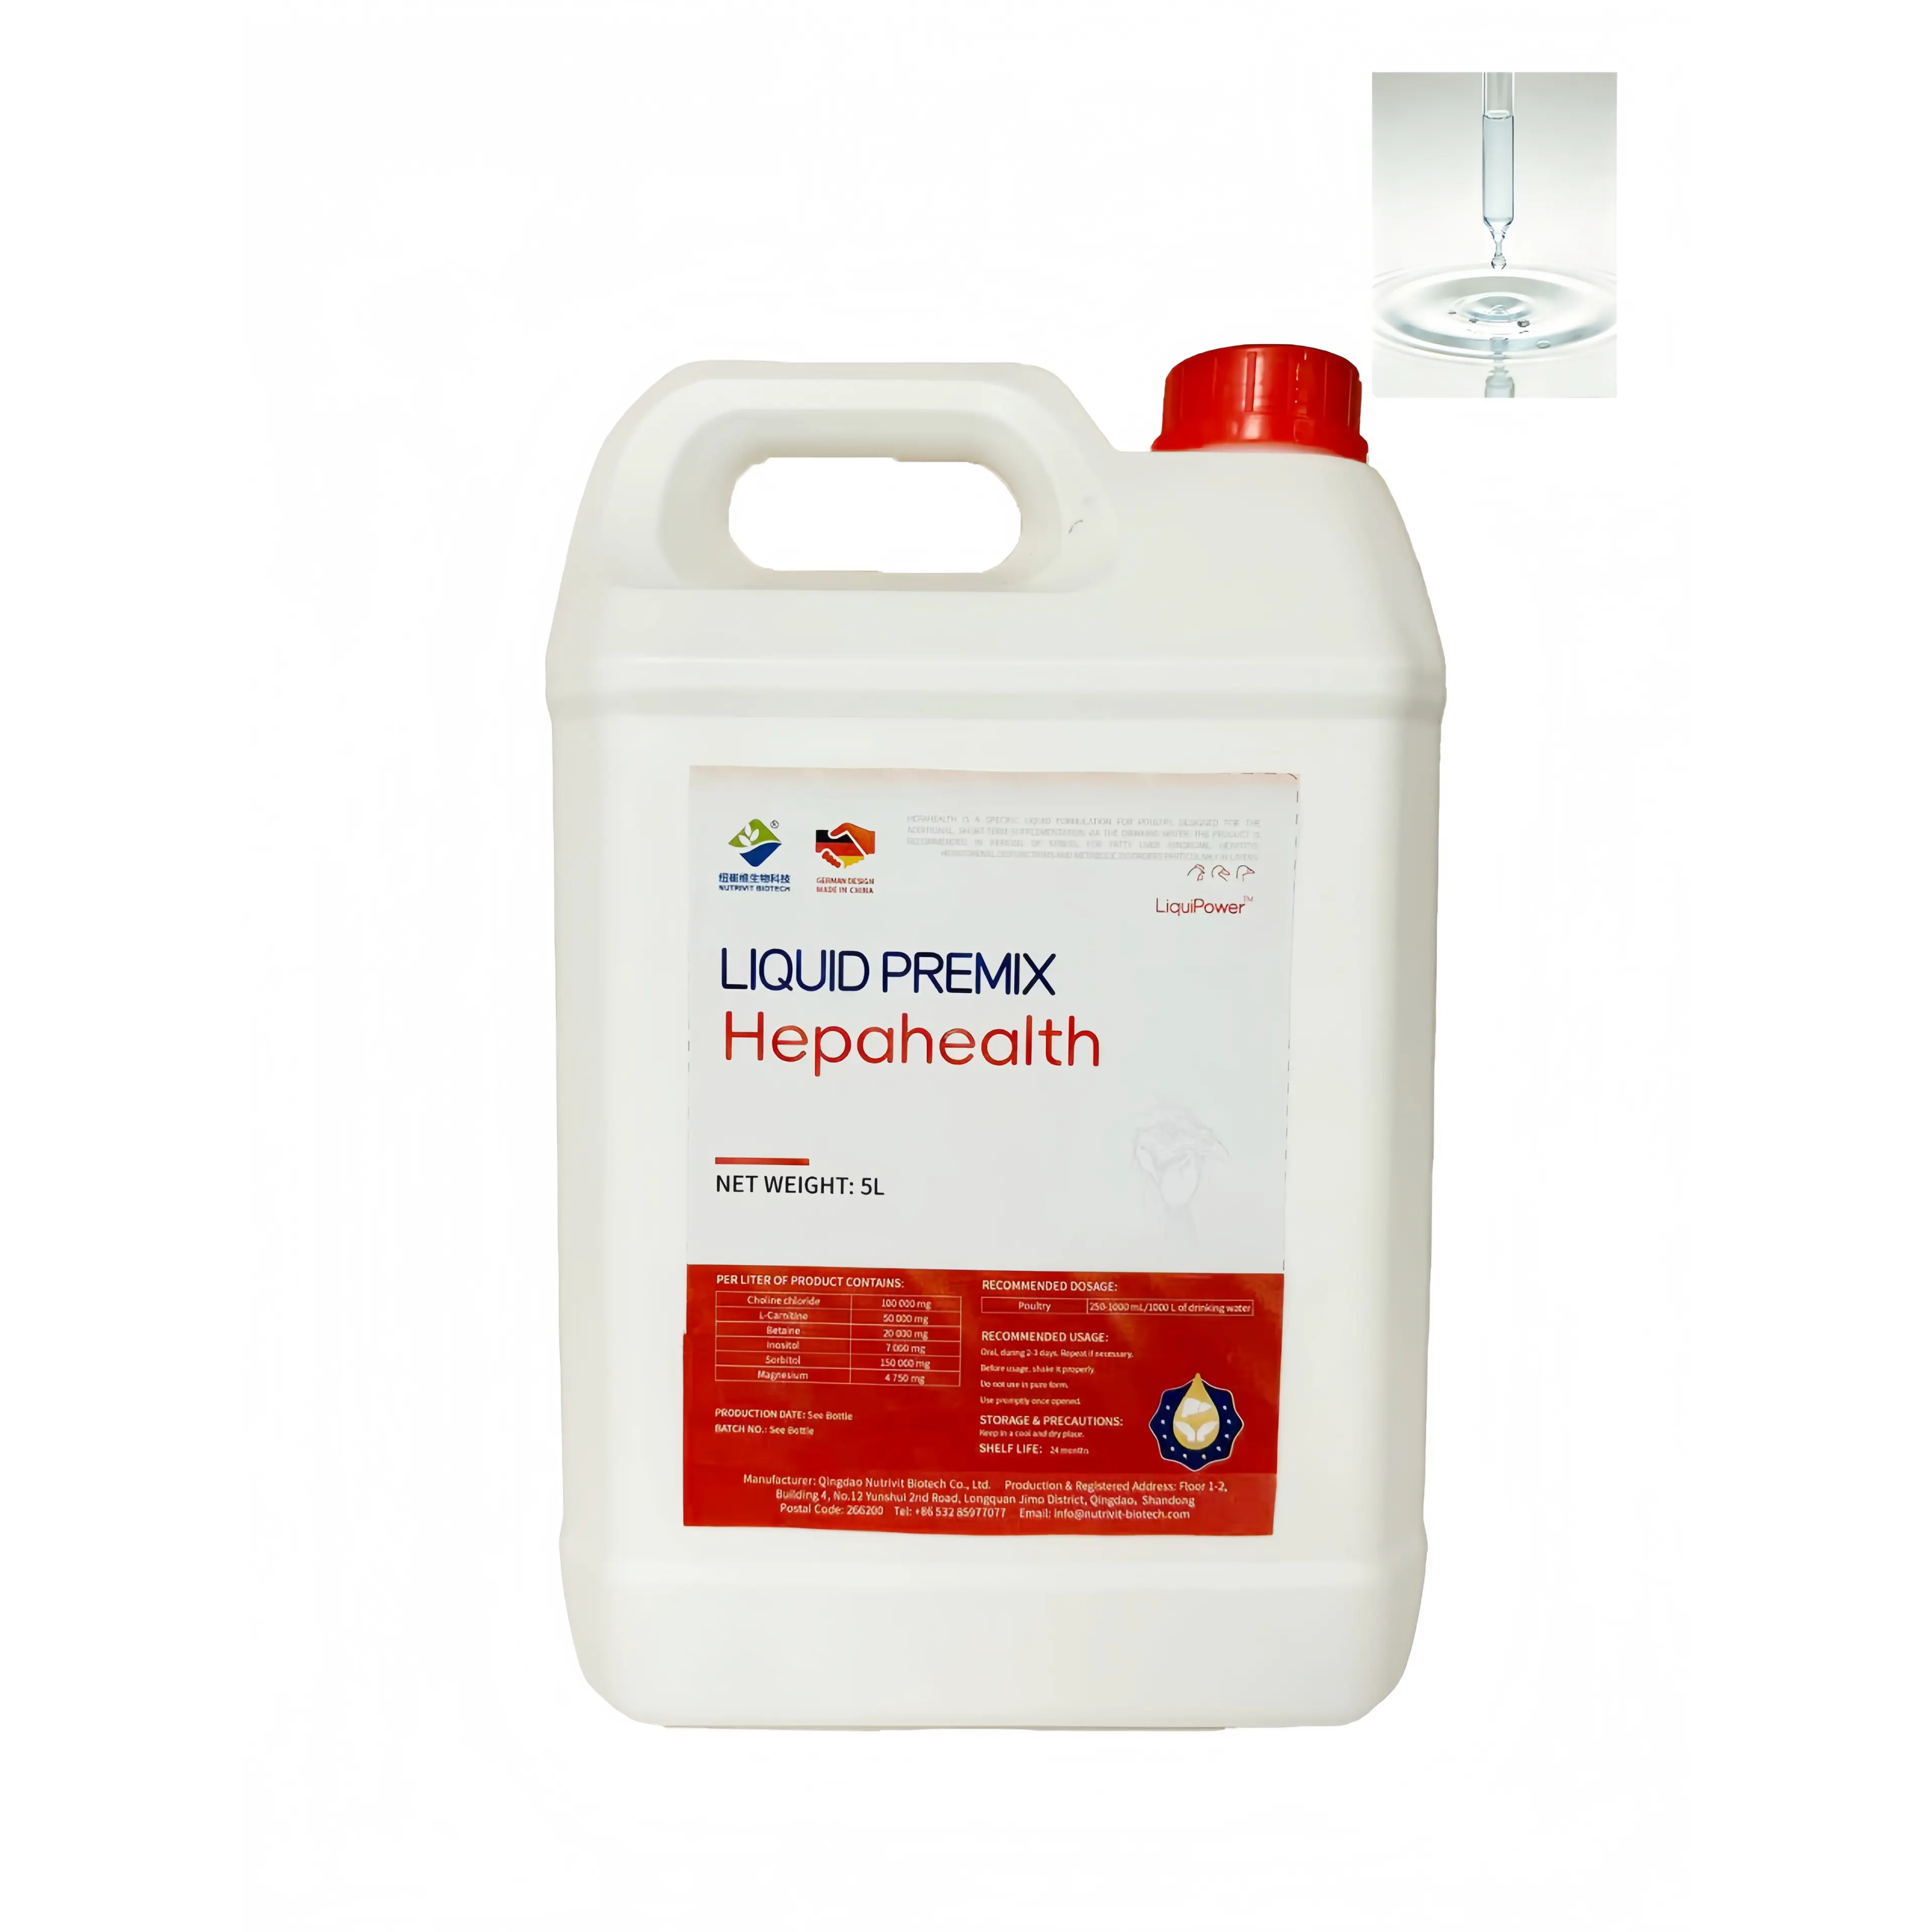
Превенција синдрома масти у јетри захтева циљану нутрициону подршку која директно решава два главна грла у метаболизму печенице птице: нарушену сглоб ВЛДЛ-а и недовољну оксидацију митохондријских масних киселина. Холин је неопходан не само као хранљива материја, већ и као структурна кичма фосфатидилхолина, потребне компоненте обвијача честица ВЛДЛ-а. Недостатак триглицерида доводи до тога да се триглицериди не излучују, што изазива стеатозу за неколико сати. Бетаин допуњује холин тако што делује као метил донор у реметилирању хомоцистеина у метионин, чиме се штеди дијететски холин за синтезу ВЛДЛ и смањује оптерећење метил-група у јетри. У међувремену, Л-карнитин омогућава брзину ограничавања транспорта дуговерижних масних ацил-ЦОА преко унутрашње митохондријске мембране корака који је неопходан за β-оксидацију. У условима високе липогенезе, ендогенна синтеза карнитина може бити недовољна, а додатак исхрани осигурава да се масне киселине усмеравају на производњу енергије, а не складиштење. Заједно, метил донатори и Л-карнитин стварају координисани пуш-пул ефекат: холин и бетаин гурају триглицериде у ВЛДЛ за извоз, док Л-карнитин гура масне киселине у митохондрије за оксидацију. Ова стратегија двоструког пута враћа метаболички ток, усклађује се са природном физиологијом јетре у слојевима високог приноса и нуди одрживи, механизамски базирани приступ превенцији ФЛС-а.
Често постављене питања
Која је главна улога пилеће јетре у метаболизму липида?
Пилећа јетра је веома активна у де ново липогенези, митохондријској β-оксидацији и у саставу липопротеина веома ниске густине (ВЛДЛ), који се углавном извозе како би се подржала синтеза липида у жуткавици код кокоши но
Шта узрокује синдром масти у јетри код пилића са великим приносом?
Синдром масти у јетри у слојевима са високим приносом је резултат метаболичке каскаде изазване хроничним преоптерећењем хранљивим материјама, што кулминира акумулацијом липида и митохондријском дисфункцијом.
Како холин спречава синдром масти у јетри код пилића?
Холин је од суштинског значаја за формирање фосфатидилхолина, компоненте потребне за формирање VLDL честица. Без довољног количине холина, триглицериди се не могу извести, што доводи до стеатозе.
Коју улогу игра Л-карнитин у спречавању синдрома масти у јетри?
Л- карнитин олакшава транспорт дуговерижних масних киселина у митохондрије за β- оксидацију, спречавајући њихово акумулирање као интрацелуларни триглицериди.